❌

Reading view

La proactividad de la mosca del vinagre para recuperar su ritmo circadiano

Los ritmos circadianos son oscilaciones periódicas de la fisiología y el comportamiento ajustadas al ciclo día/noche. Los encontramos en bacterias, plantas, hongos y animales. La regulación de estos ritmos ha aparecido de forma independiente en diferentes linajes evolutivos, lo que indica su importancia para el funcionamiento de los seres vivos.

El comportamiento de la mosca del vinagre (Drosophila melanogaster) (Figura 1) muestra un marcado ritmo circadiano, con una actividad locomotora máxima en las transiciones día/noche, es decir, al atardecer y al amanecer. El resto del tiempo, su actividad disminuye y es en esos periodos cuando las moscas dedican algún tiempo a dormir.
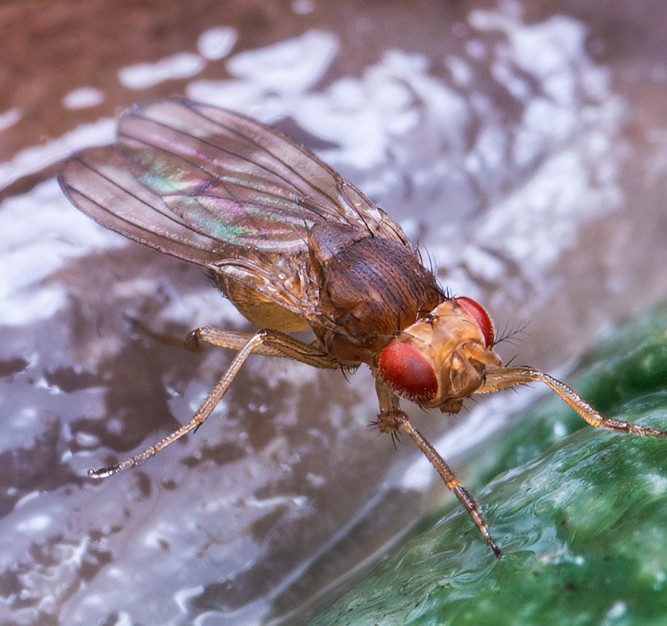
Figura 1. La mosca del vinagre Drosophila melanogaster. Foto: Lgcerda, CC BY-SA 4.0.

Las moscas, como la mayoría de los animales, pasan por “estados tipo sueño” caracterizados por periodos reversibles de inactividad ajustados a un ritmo circadiano, disminución de la respuesta a estímulos, un lugar o postura específicos y regulación homeostática (recuperación del tiempo perdido de sueño). El cerebro de Drosophila muestra oscilaciones de actividad poco después del comienzo del sueño y justo antes del despertar, mientras que su fase de sueño profundo se caracteriza por una baja actividad cerebral.

El ritmo circadiano de Drosophila se controla mediante un “reloj molecular” basado en cuatro proteínas. Dos factores (CLK y CYC, por Clock y Cycle) activan la expresión de otras dos proteínas (PER y TIM, por Period y Timeless) que a su vez son represoras de CLK y CYC. Todo esto ocurre en unas 150 neuronas del cerebro de la mosca, compuesto por alrededor de 100 000 neuronas.

Durante la noche, PER y TIM se unen y entran en el núcleo donde actúan inhibiendo a CLK y CYC. Tras el amanecer, la luz diurna detectada por un criptocromo provoca la degradación de TIM. Sin la unión a TIM, PER también resulta degradado, con lo que los niveles de estas dos proteínas son muy bajos durante el día, aunque se siga produciendo y acumulando el ARN mensajero de ambas. Cuando la luz desciende en el crepúsculo, la proteína TIM vuelve a sintetizarse, se une a PER protegiéndola de la degradación, y ambas entran en el núcleo durante la noche para inhibir a CLK y CYC, cerrando el ciclo de 24 h (Figura 2).
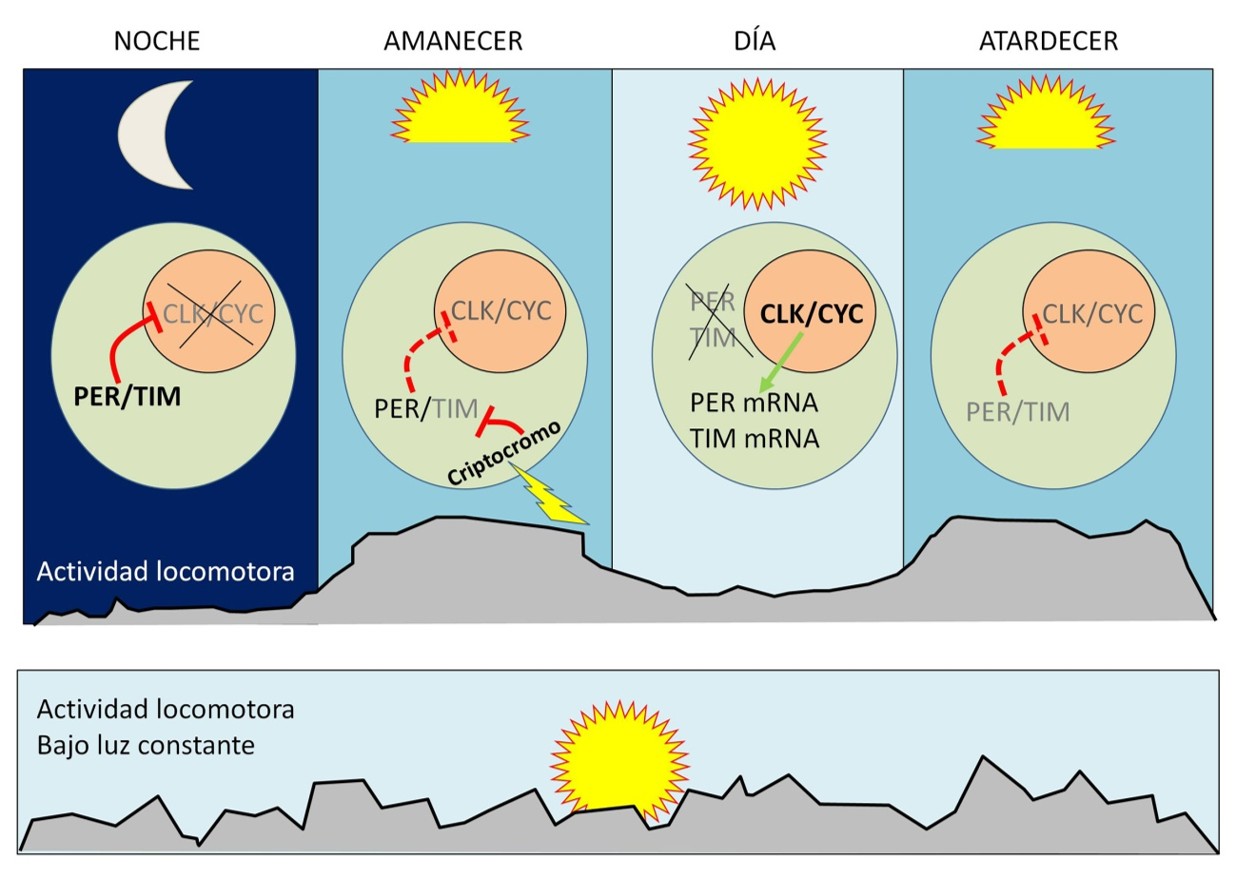
Figura 2. El ritmo circadiano es regulado por la interacción de las proteínas Clock (CLK), Cycle (CYC), Period (PER) y Timeless (TIM) en un pequeño grupo de neuronas. Durante la noche, el complejo PER/TIM penetra en el núcleo e inhibe a CLK y CYC. Al amanecer, la luz activa un criptocromo que induce la degradación de TIM. Al quedar aislado, PER también resulta degradado. CLK y CYC se activan progresivamente en el núcleo a lo largo del día, produciendo ARN mensajeros para PER y TIM, aunque las proteínas correspondientes siguen inhibidas. Al disminuir la luz al atardecer, la proteína TIM se va estabilizando, protege a PER de la degradación, y ambas forman el complejo PER/TIM que cierra el ciclo durante la noche. Este reloj molecular induce un comportamiento locomotor mayor en las transiciones día/noche. En condiciones de iluminación continua (abajo), TIM no llega a producirse, y la actividad es irregular a lo largo de todo el día. Ilustración: Ramón Muñoz-Chápuli.

Las moscas mutantes para estos genes pierden su ritmo circadiano, y muestran una actividad irregular a lo largo de todo el día. Esto no es letal para las moscas, pero sí muy perjudicial para su fecundidad y esperanza de vida, que se ven reducidas. Algo similar ocurre si las moscas son expuestas continuamente a la luz (Figura 2). Timeless es degradada de forma permanente, Clock y Cycle no son inhibidas, y las moscas se mantienen activas durante todo el tiempo.

Un grupo de investigación de la universidad de Münster (Alemania) acaba de publicar en Science un sorprendente artículo sobre este tema. Los investigadores dieron a las moscas la oportunidad de moverse libremente por habitáculos parcialmente cubiertos y resguardados de la luz. Otras moscas permanecieron expuestas a la luz continua, y a otro grupo solo se le permitió acceder a los habitáculos parcialmente oscurecidos tras tres o cinco días de exposición continua a la luz, con la consiguiente ruptura del ciclo circadiano (Figura 3).
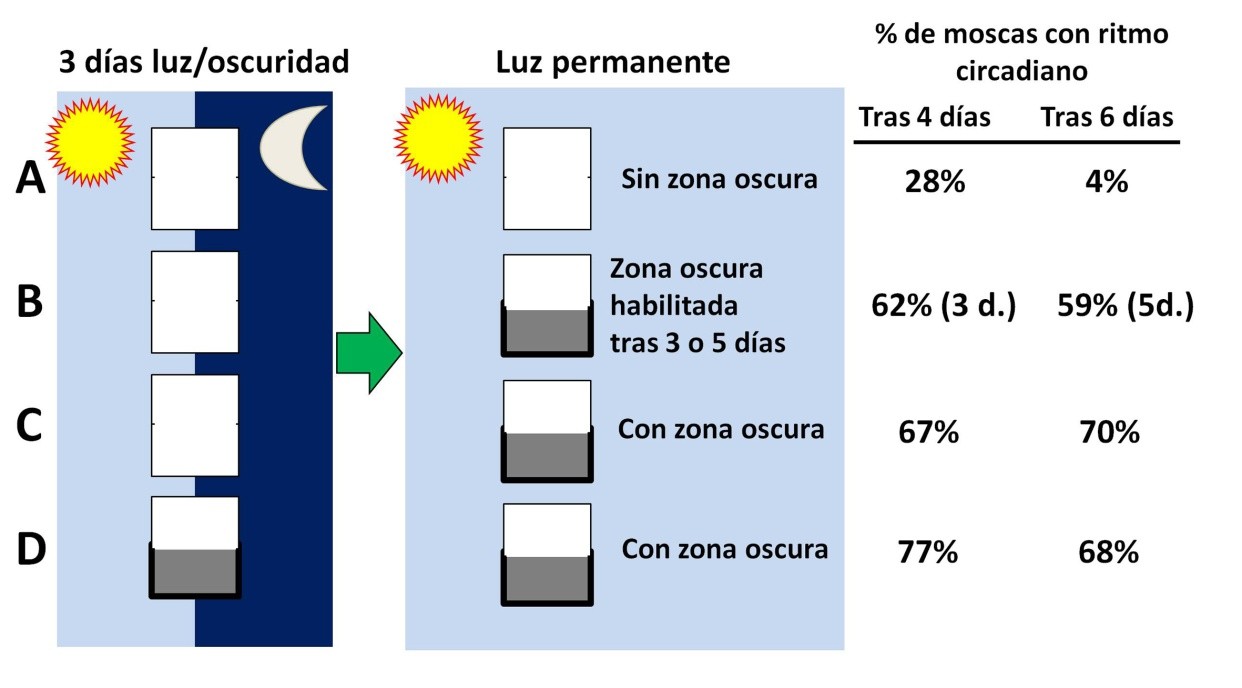
Figura 3. Resumen del experimento realizado por Coculla et al. (2026). Las moscas fueron colocadas en habitáculos que podían estar parcialmente protegidos de la luz (gris oscuro). Tras su aclimatación, fueron sometidas a iluminación permanente. Las que no podían optar por zonas oscuras del habitáculo perdieron su ritmo circadiano (A). Alrededor del 70% de las que sí podían elegir entre luz y oscuridad mantuvo dicho ritmo (C y D). Sorprendentemente, un 60% de las que habían perdido el ritmo circadiano a causa de la iluminación continua lo recuperó cuando pudieron optar por zonas resguardadas de la luz tras 3 o 5 días (B). Ilustración: Ramón Muñoz-Chápuli, basada en resultados de Coculla et al. (2026).

Como era de esperar, la mayoría de las moscas expuestas continuamente a la luz perdió su ritmo circadiano, mostrando patrones irregulares de actividad. Sin embargo, alrededor del 70% de las moscas que podían elegir libremente entre luz y oscuridad mantuvo su ritmo circadiano de actividad, repartiendo su tiempo entre ambas zonas. Y lo más sorprendente fue que alrededor de un 60% de las moscas expuestas a la luz durante tres o cinco días, y que habían perdido su ritmo circadiano, lo recuperó rápidamente tras darles la oportunidad de elegir entre ambientes iluminados y oscuros. Este ritmo recuperado o mantenido fue algo más largo que el típico ciclo diario, alcanzando entre 26 y 28 horas.

Esto quiere decir que las moscas ajustaban su comportamiento y sus preferencias ambientales para mantener o recuperar el ritmo circadiano perdido. Lo más singular es que una vez perdido ese ritmo, y por tanto con el reloj circadiano desajustado, las moscas “supieran” en qué medida debían alternar áreas iluminadas y oscuras para restablecer su reloj.

Por otro lado, la calidad del sueño de las moscas, valorada por el número de episodios de sueño y su duración, se deteriora en las moscas que han perdido el ritmo circadiano, pero tiene a recuperarse también, de forma lenta y progresiva, una vez restablecido dicho ritmo.

El experimento no solo insiste en la importancia de los ritmos circadianos para la fisiología animal, sino que asocia el mantenimiento de los ritmos con pautas activas de comportamiento que resultaban impensables hasta ahora.

Referencias

Coculla, A., García Rodríguez, L., Ogueta, M. et al. (2026). Fruit flies actively restart their circadian clock by proactively shaping their environment. Science doi: 10.1126/science.adw2239.

Sobre el autor: Ramón Muñoz-Chápuli Oriol es Catedrático de Biología Animal (jubilado) de la Universidad de Málaga.

El artículo La proactividad de la mosca del vinagre para recuperar su ritmo circadiano se ha escrito en Cuaderno de Cultura Científica.
  •  

I ceppi batterici resistenti hanno progressivamente reso inefficaci molti a…

I ceppi batterici resistenti hanno progressivamente reso inefficaci molti antibiotici di ultima istanza, modificando le proprie pareti cellulari per impedire l'azione dei farmaci. Un team di ricerca guidato dal chimico John Moses del Cold Spring Harbor Laboratory, in collaborazione con Howard Hang di Scripps Research, ha sviluppato una strategia alternativa: anziché progettare nuove molecole antibiotiche, i ricercatori hanno mirato a disattivare i meccanismi di difesa dei patogeni. Il bersaglio dello studio è l'enzima secreted antigen A (SagA), un'idrolasi utilizzata dal batterio Enterococcus faecium per modellare la propria parete cellulare e nascondere i punti d'attacco del farmaco. Sfruttando la tecnica di sintesi chimica Diversity Oriented Clicking, il gruppo ha identificato la molecola pghi-4, capace di inibire l'enzima SagA. La somministrazione combinata di pghi-4 e vancomicina ha permesso di ridurre fino a otto volte la dose di antibiotico necessaria per eliminare i ceppi resistenti nei test di laboratorio, dimostrando un'efficacia confermata anche su modelli animali. L'approccio apre la strada al recupero di molecole farmacologiche storiche per contrastare le infezioni ospedaliere e altre patologie complesse.
  •  

¿Necesitamos una nueva teoría de la evolución, o solo mejores metáforas?


Desde hace una década, un grupo de biólogos y filósofos sostiene que el marco heredado de los años cuarenta se ha quedado corto. Conviene mirar el debate sobre la teoría de la evolución con calma: hay algo de necesidad real y algo de estrategia retórica.

teoría de la evolución
Foto: Amir-abbas Abdolali / Unsplash

Dos hermanos gemelos idénticos separados al nacer, criados por familias distintas, en casas distintas y a veces en culturas distintas, se reencuentran de adultos. Comparten el cien por cien de su genoma y casi nada más. Cuando los psicólogos los miden el resultado es que se parecen mucho, y se parecen justo donde nadie lo esperaba, en la personalidad, en las puntuaciones de inteligencia, en la propensión a ciertos trastornos. El estudio de Minnesota lleva desde los años ochenta acumulando casos así.

De ese hallazgo cuelga una pregunta más grande, y esa pregunta es la que agita hoy a la biología evolutiva. ¿Qué peso tienen los genes en lo que somos? Y, sobre todo, ¿sirve todavía la teoría con la que llevamos ochenta años contestando?

En 2014, la revista Nature publicó un cara a cara entre dos grupos de investigadores bajo un título que lo dice todo: «¿Necesita la teoría evolutiva un replanteamiento?». Un bando respondía que sí y proponía una Síntesis Evolutiva Extendida. El otro, con Douglas Futuyma y Gregory Wray a la cabeza, contestaba que no hacía falta. Ese desacuerdo sigue vivo y vale la pena recorrerlo de principio a fin.

La visión heredada

La teoría de la evolución que aún hoy se enseña en las aulas es, más o menos, la Síntesis Moderna, forjada entre los años treinta y cuarenta. Fundió la selección natural darwiniana con las matemáticas de la herencia que estaban desarrollando entonces los pioneros de la genética de poblaciones.

Sus pilares son tres. La herencia que importa para la evolución es la genética. La selección natural es el único motor del cambio adaptativo acumulativo. Y existe una barrera estricta entre las células que producen óvulos y espermatozoides y el resto del cuerpo, de modo que lo que le ocurre a un organismo durante su vida no pasa a sus hijos.

El gran ausente de aquel edificio fue el desarrollo embrionario, todo lo que sucede entre el huevo fecundado y el animal adulto. El organismo quedó reducido a un mero vehículo entre los genes y el ambiente, hasta el punto de que el biólogo Brian Goodwin pudo quejarse de que los genes habían desplazado a los organismos.

Lo que hemos aprendido desde entonces

El primer golpe llegó pronto. En 1968, Motoo Kimura propuso la teoría neutralista: buena parte de la variación molecular no la fija la selección, sino el azar. La selección seguía reinando en el terreno adaptativo, pero la imagen de que todo cambio genético respondía a una ventaja se vino abajo.

Después vinieron más invitados, y merece la pena presentarlos con un ejemplo cada uno.

La biología evolutiva del desarrollo, o evo-devo, mostró que unos pocos genes reguladores funcionan como interruptores maestros y encauzan las formas que un cuerpo puede llegar a tener. Son los que deciden dónde va una pata y dónde una antena.

La plasticidad fenotípica reveló que un mismo genoma puede producir cuerpos distintos según el entorno. Los renacuajos que crecen entre depredadores desarrollan colas más anchas y musculosas que sus hermanos criados en un estanque tranquilo.

La epigenética describió marcas químicas que apagan o encienden genes sin tocar la secuencia del ADN, y que a veces pasan de una generación a la siguiente.

Y la construcción de nicho recordó que los seres vivos no solo se adaptan al entorno: también lo transforman. El castor que levanta una presa no hereda a sus crías únicamente sus genes, sino también el estanque.

Cada uno de estos fenómenos es real. La discusión no es si existen, sino si obligan a rehacer la arquitectura de la teoría o solo a ampliar el catálogo de mecanismos.

Dónde está hoy la discusión

Aquí conviene deshacer un malentendido. La Síntesis Extendida no es un consenso que haya destronado a la teoría clásica. Es un programa de investigación activo, con aportaciones desiguales según el campo. Sus propios defensores, como Kevin Laland y sus colegas, admiten en su artículo programático que se trata de una propuesta abierta.

Desde la biología más ortodoxa, autores como Futuyma replican que los fenómenos invocados son reales, pero acomodables dentro del marco neodarwinista. El filósofo John Welch ha argumentado que las pretensiones de cambio de paradigma están sobredimensionadas. El campo está en disputa, no en relevo.

La crítica desarrollista

El frente más radical es filosófico. Susan Oyama, con su teoría de los sistemas de desarrollo, niega que los genes contengan un plan preformado del organismo. Toda forma, sostiene, emerge de la interacción entre recursos heterogéneos: genes, células, ambiente, conducta. Es la tesis de la paridad causal, según la cual ningún factor tiene prioridad sobre los demás.

La evidencia que esgrimen estos críticos es, sin embargo, limitada. La herencia epigenética entre generaciones está documentada, sobre todo en plantas. En mamíferos, las células que forman óvulos y espermatozoides borran casi todas esas marcas en cada ciclo, lo que hace muy improbable una transmisión estable más allá de dos o tres generaciones. Y la construcción de nicho ya la había descrito Richard Lewontin en los años setenta sin abandonar el marco clásico.

El núcleo de la cuestión

Volvamos a los gemelos, porque ahí es donde la versión fuerte del desarrollismo se queda sin explicación.

Conviene primero aclarar una palabra que se malinterpreta a diario. La heredabilidad de un rasgo no mide cuánto de ese rasgo viene de los padres. Mide qué proporción de las diferencias entre los individuos de una población se corresponde con diferencias genéticas, en ese momento y en ese entorno. Es un dato sobre grupos, no una sentencia sobre nadie en particular.

Con esa cautela, el resultado es firme. Si todos los factores del desarrollo pesaran por igual, dos gemelos idénticos criados aparte deberían parecerse poco. Ocurre lo contrario. Y en otras especies, los individuos con genoma idéntico resultan ser muy semejantes. Si Oyama tuviera razón en su versión radical, esas coincidencias serían un misterio.

No se trata de negar que el entorno importe, porque importa, y mucho. Se trata de reconocer que entre todos los factores medibles el genético es el que más pesa de forma sistemática. La asimetría es empírica, no un dogma metafísico.

Una conclusión con dos mapas

La Síntesis Extendida ha ensanchado la biología evolutiva en regiones donde la teoría clásica estaba ciega, y ese es un mérito que nadie debería negarle. Pero ampliar no es lo mismo que sustituir, y el entusiasmo confunde a veces las dos cosas.

La lección de fondo es metodológica. La crítica conceptual de Oyama o de Griffiths es necesaria y afilada, pero opera como filosofía, no como teoría empírica rival con predicciones contrastables. La genética cuantitativa, en cambio, acumula resultados replicables desde hace décadas. Confundir un marco filosófico crítico con una alternativa científica establecida es el error más común de este debate.

En ciencia el mapa conceptual importa, pero la capacidad de explicar los datos importa mucho más.

Sobre el autor: Pablo Rodríguez Palenzuela es Catedrático de Bioquímica y Biología Molecular en la Universidad Politécnica de Madrid.


El artículo ¿Necesitamos una nueva teoría de la evolución, o solo mejores metáforas? se ha escrito en Cuaderno de Cultura Científica.
  •  

Lo nunca visto

olo

¿Puede existir un color que nunca nadie haya visto? Esta es la verdad sobre el «olo», contada por Cochi Lillo. Un color que existe sí, pero que podemos llamar imaginario.

Conchi Lillo Delgado es profesora titular en el Departamento de Biología Celular y Patología de la Universidad de Salamanca e investigadora del Instituto de Nuerociencias de Castilla y León. Es asimismo investigadora principal del grupo ‘Trastornos degenerativos del sistema visual’. Dilvulgadora científica, es autora del libro ¡Abre los ojos!


Edición realizada por César Tomé López

El artículo Lo nunca visto se ha escrito en Cuaderno de Cultura Científica.
  •  

Un origen ancestral para el organizador de Spemann-Mangold

«No es el nacimiento, el matrimonio o la muerte, sino la gastrulación, el momento más importante de tu vida» (Lewis Wolpert)

La frase de este gran biólogo británico parece una humorada, pero tiene mucho sentido. Durante nuestra gastrulación actuó un organizador que dirigió nuestro desarrollo y nos hizo ser como somos.

Tenemos que explicar esto más despacio. La gastrulación es esa parte del desarrollo embrionario en la cual unas células superficiales se introducen en el embrión para formar la futura cavidad digestiva. Estas células se denominan endodermo. Las células que permanecen en la superficie (ectodermo) originarán la epidermis y el sistema nervioso. Podemos ver la gastrulación de un anfibio en la primera parte de este vídeo:

Todos los animales, excepto las esponjas y los placozoos [1], gastrulan. En la gastrulación de los demás animales (excepto los cnidarios y los bellísimos ctenóforos) un grupo de células (el mesodermo) se intercala entre ecto y endodermo. De estas células mesodérmicas derivan múltiples sistemas: muscular, circulatorio, excretor, etc.

La pregunta es ¿cómo las células “saben” hacia dónde dirigirse y lo que tienen que hacer? Y ahí es donde entra en escena el organizador.

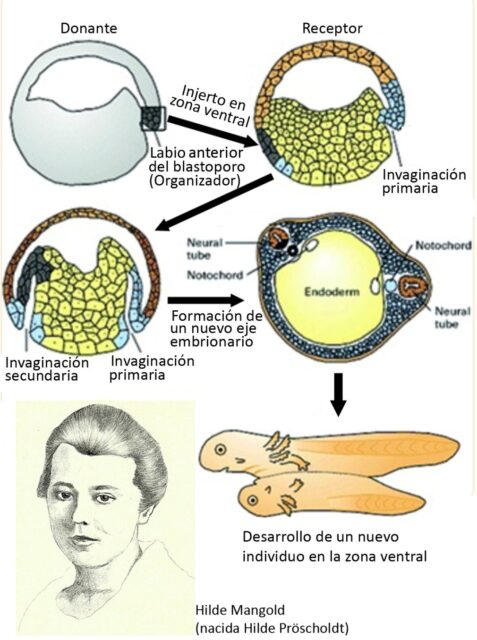
En los años 20 del siglo pasado, Hilde Mangold, una estudiante de doctorado del laboratorio de Hans Spemann (Instituto Zoológico de Friburgo), investigaba el desarrollo de los anfibios. Uno de sus experimentos consistió en trasplantar un fragmento del labio anterior del blastoporo (el orificio creado por la entrada del endodermo durante la gastrulación) a otras zonas de la gástrula. Sorprendentemente, en el lugar del injerto se generaba un segundo embrión (Figura 1). Mangold comprobó que las células injertadas no formaban el embrión, sino que inducían a los tejidos próximos, cambiando su destino, para constituir un nuevo individuo. Esta región del labio anterior del blastoporo con tan extraordinarias propiedades recibió el nombre de “organizador de Spemann-Mangold”[2].

Figura 1. Figura 1. Experimento crucial de Hilde Mangold. El injerto del labio anterior del blastoporo en la región ventral de otra gástrula cambia el destino de los tejidos circundantes y origina un nuevo individuo. Modificado de Van Robays, J., Hilde Mangold-Pröscholdt (1898 – 1924): The Spemann-Mangold Organizer, con licencia CC-BY 4.0. El retrato de Mangold es de Patricia Díaz Belamendia, CC0.

El organizador fue uno de los descubrimientos más trascendentales para la biología del siglo XX, ya que revelaba la existencia de unos insospechados mecanismos moleculares de inducción (morfógenos). Los morfógenos fueron identificados en las siguientes décadas, y permitieron comprender cómo se construye un organismo durante el desarrollo. Por desgracia, el destino de Hilde Mangold fue trágico, ya que falleció en un accidente doméstico a la edad de 25 años. Su supervisor, Hans Spemann, recibió el Nobel de Medicina y Fisiología en 1935, en lo que constituye el único Premio Nobel de Medicina otorgado a un trabajo de doctorado.

Hoy día conocemos bien cómo actúa el organizador en la gastrulación de los vertebrados, controlando la organización espacial del embrión y el destino de sus diferentes tejidos. En cambio, el desarrollo de la mosca del vinagre (Drosophila) no implica un organizador como el de los vertebrados, ya que intervienen sobre todo morfógenos de origen materno. Por esto, se llegó a pensar que el organizador de Spemann-Mangold era una innovación evolutiva de los vertebrados.

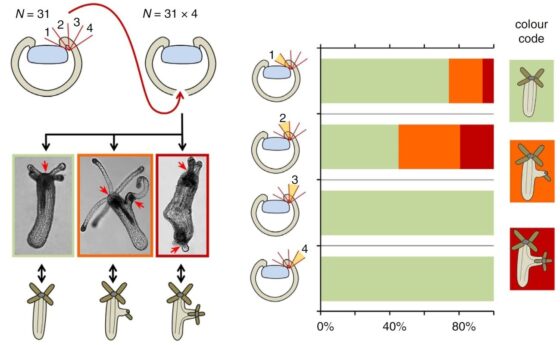
Hace diez años, un grupo de investigadores de la Universidad de Viena demostró la existencia del organizador en un cnidario, la anémona Nematostella vectensis. El trasplante del margen del blastoporo inducía un segundo eje corporal, una nueva boca y una nueva cavidad digestiva (Figura 2). Lo más relevante era que los morfógenos identificados en este proceso de inducción correspondían con los del organizador de Spemann-Mangold. Esto fue una auténtica sorpresa, ya que el linaje de los cnidarios se separó del resto de animales (los bilaterales) hace alrededor de 600 millones de años, en los albores de la evolución animal.

Figura 2. Demostración de la existencia de un organizador en el cnidario Nematostella. Se injertan células procedentes de las zonas marcadas 1-4, próximas al margen del blastoporo. Solo las procedentes de la zona 1 y, sobre todo, de la 2, inducen un nuevo eje corporal. De Kraus et al. (2016), https://www.nature.com/articles/ncomms11694, con licencia CC-BY 4.0.

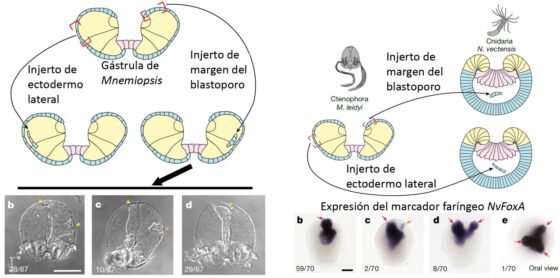
Un estudio que acaba de publicarse en Nature por el grupo de Andreas Hejnol (Universidad de Jena) ha confirmado el origen antiguo del organizador. El modelo estudiado fue un ctenóforo (Mnemiopsis leidy), lo cual tiene un interés especial, como veremos luego. De nuevo, el trasplante del margen blastoporal indujo la formación de un nuevo eje corporal. Además, cuando el organizador se trasplantó, no a otro ctenóforo, sino a la anémona Nematostella, se generó un segundo eje en un 16% de los casos (Figura 3). Esto demostraba el carácter “universal” del mecanismo organizador, capaz de funcionar en animales muy alejados evolutivamente.

Figura 3. Izquierda: El margen del blastoporo del ctenóforo Mnemiopsis leidy también tiene función organizadora. De 67 injertos, 28 generaron una segunda boca y faringe (b) y 10 una nueva boca (c). El injerto de ectodermo lateral no tuvo ningún efecto. Derecha: El injerto del organizador de Mnemiopsis en gástrulas del cnidario Nematostella indujo un segundo sitio de expresión de NvFoxA, un marcador de la faringe, en 11 de 70 casos. Modificado de Kremnyov et al. (2026), cita completa en referencias, con licencia CC-BY 4.0.

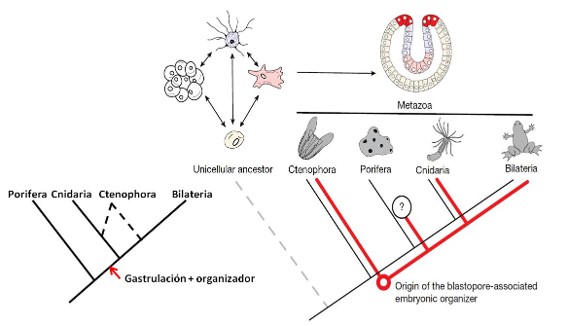
Hay una derivada especialmente interesante de este experimento. Existe un debate no resuelto en la actualidad acerca de la posición de los ctenóforos en la evolución animal. Tradicionalmente se les venía relacionando con los cnidarios, con los que comparten una organización corporal similar. Sin embargo, a partir de 2008, diversos estudios han propuesto que los ctenóforos constituyen el linaje más basal de todos los animales (Figura 4). Desde entonces se han sucedido argumentos a favor y en contra de esta postura. Lo que nos interesa ahora es la idea, lanzada por el grupo de Hejnol, de que el organizador estaría en la mismísima base de la organización animal, y que fue decisivo para dar orden espacial a un conglomerado ancestral de células. Se trata de una hipótesis bastante discutible, pero que estimulará sin duda el debate sobre el origen y la evolución temprana de los animales.

Figura 4. Izquierda: Hipótesis tradicional sobre la filogenia basal de los animales. Las esponjas (Porifera) serían el linaje más basal, mientras que los ctenóforos estarían relacionados con cnidarios o bilaterales. El origen del organizador se asocia al proceso de gastrulación, que no existe en las esponjas. Derecha: Si asumimos el carácter basal de los ctenóforos, de acuerdo con recientes estudios, gastrulación y organizador serían procesos concomitantes con el propio origen de los animales. Se supone que en las esponjas estos procesos se habrían perdido. De Kremnyov et al. (2026), cita completa en referencias, con licencia CC-BY 4.0.

Referencias

Kremnyov, S., Lebedeva, T., Genikhovich, G. et al. (2026) A blastoporal organizer in a ctenophore Nature doi: 10.1038/s41586-026-10643-z.


Sobre el autor: Ramón Muñoz-Chápuli Oriol es Catedrático de Biología Animal (jubilado) de la Universidad de Málaga.

Notas:

[1] Los placozoos son unos minúsculos animales marinos en forma de disco que carecen de órganos.

[2] En muchos libros aparece como “organizador de Spemann”, lo que constituye una flagrante injusticia.

El artículo Un origen ancestral para el organizador de Spemann-Mangold se ha escrito en Cuaderno de Cultura Científica.
  •  

PhET: mais de 170 simulações gratuitas para aprender física, química, matemática e biologia de outra forma interativa

Criada pela Universidade do Colorado, a plataforma PhET, totalmente gratuita e sem publicidade, permite explorar fenómenos científicos em simulações interativas desenvolvidas e validadas por investigadores. Está disponível em diversos idiomas, não exige registo nem instalação de software.

The post PhET: mais de 170 simulações gratuitas para aprender física, química, matemática e biologia de outra forma interativa appeared first on Tek Notícias.

  •  

Claude Fable 5 e Claude Mythos 5 são a última geração do modelo de IA da Anthropic mais poderoso do mercado

O Claude Fable 5 é a primeira versão pública da classe Mythos da Anthropic e supera todos os modelos anteriores em praticamente todos os benchmarks testados. Mas chegou ao mercado com salvaguardas tão conservadoras que perguntas básicas de biologia ativam o sistema de segurança.

The post Claude Fable 5 e Claude Mythos 5 são a última geração do modelo de IA da Anthropic mais poderoso do mercado appeared first on Tek Notícias.

  •  

Claudio Di Russo, entomologo e speleologo affiliato alla Società Speleologi…

Claudio Di Russo, entomologo e speleologo affiliato alla Società Speleologica Italiana, ha guidato un’ispezione scientifica all’interno di un condotto artificiale profondo venticinque metri sull’isola di Alonnisos, nel Mar Egeo, scoprendo una nuova forma di vita specializzata per l’oscurità assoluta. Si tratta di una specie sconosciuta di grillo cavernicolo del genere Dolichopoda, individuata mentre si muoveva […]
  •  
❌