❌

Reading view

Un sistema defensivo es legado por las plantas a su descendencia a través del suelo

Las plantas tienen que enfrentarse continuamente a desafíos de su entorno. Necesitan luz, nutrientes, agua y, no menos importante, defensas contra los herbívoros que se alimentan de ellas. Estas defensas pueden ser directas como, por ejemplo, el desarrollo de espinas o la acumulación de sustancias tóxicas. También pueden ser indirectas, basadas en la atracción de depredadores o parasitoides de los herbívoros que las atacan.

Es especialmente interesante el caso de los parasitoides. Reciben este nombre los animales, frecuentemente insectos himenópteros, que depositan sus huevos en un hospedador. Cuando las larvas emergen, se alimentan de los tejidos de dicho hospedador, que se mantiene vivo por algún tiempo. Finalmente, las voraces larvas causan la muerte de su víctima. Por esta razón, no se consideran auténticos parásitos, y los denominamos parasitoides. Este comportamiento, referido en particular a ciertos icneumónidos, fue mencionado por Charles Darwin en una carta a su amigo Asa Gray en 1860, porque le hacía difícil creer en la existencia de la benevolencia  divina:

 “No puedo persuadirme de que un Dios benévolo y omnipotente hubiera diseñado intencionalmente a los icneumónidos con el expreso propósito de que se alimentaran dentro del cuerpo vivo de las orugas.”

Sabíamos desde hace tiempo que una planta atacada por orugas puede liberar compuestos volátiles que atraigan parasitoides para su defensa. Esto se ha comprobado en numerosas especies de plantas, tanto silvestres como cultivadas[1].
suelo
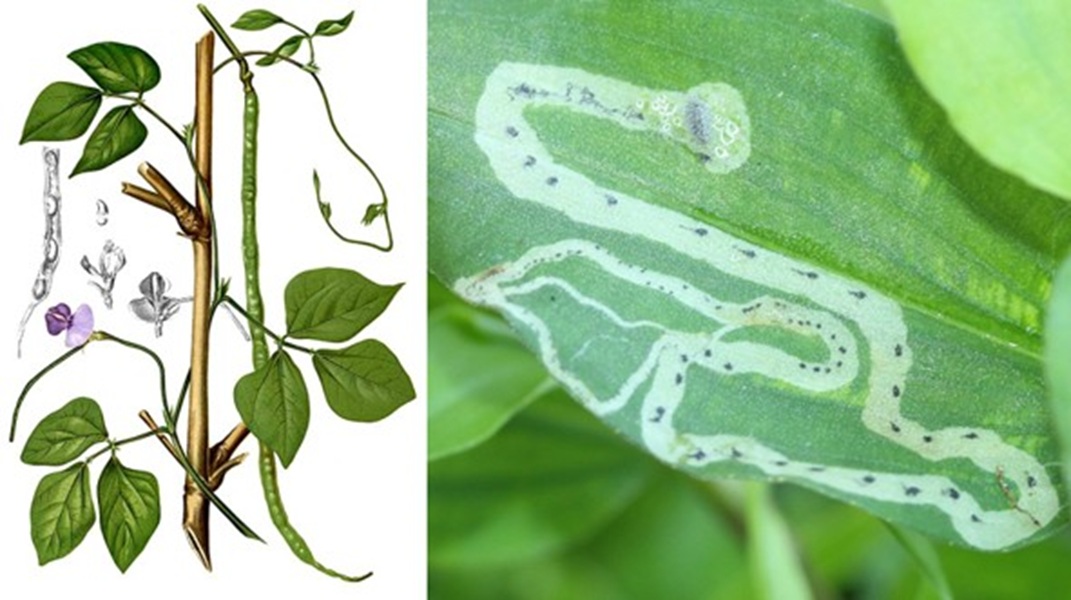
A la izquierda, la judía Vigna unguiculata utilizada en la investigación. Fuente: Francisco Manuel Blanco, Flora de Filipinas, dominio público.  A la derecha, galería excavada por una larva de la mosca minadora Liriomyza commelinae, muy similar a la citada en este estudio (Liriomyza trifolii). Obsérvese como se ensancha la galería a medida que la larva va creciendo. Fuente: Even Dankowicz, CC BY 4.0.

Un grupo de investigación chino acaba de publicar en Cell Reports un sorprendente artículo acerca de este tema. En un modelo experimental de planta atacada por una larva de mosca, el grupo demostró que este ataque no solo inducía la atracción de parasitoides, sino que además condicionaba el suelo para que futuras generaciones de plantas disfrutaran de la misma protección. La planta en cuestión es una especie de judía (Vigna unguiculata), sus atacantes son las larvas de la mosca minadora (Liriomyza trifolii) (Figura 1) y el aliado parasitoide la avispilla Neochrysocharis formosa, a la que vemos aquí poniendo huevos en su víctima:

El estudio, en primer lugar, constató que las plantas atacadas atraían activamente a los parasitoides, al tiempo que elevaban la producción de una fitohormona clave en la respuesta a la agresión: el ácido jasmónico. Una vez comprobado esto, eliminaron las plantas, y utilizaron la tierra en la que habían crecido plantas atacadas (tierra condicionada) y no atacadas por la plaga (tierra control). Las judías que crecieron en la tierra condicionada atrajeron más parasitoides que las judías control, aunque no estaban siendo atacadas. Es decir, las plantas de la siguiente generación ya estaban preparadas preventivamente para un ataque de las moscas minadoras.

A partir de esta observación, se realizó una serie de experimentos para conocer el mecanismo de esta defensa heredada. Se comprobó que el fenómeno era dependiente de la producción de ácido jasmónico. También se observó que en las raíces de las plantas atacadas aumentaba la producción de unos compuestos llamados flavonoides, muy importantes para las plantas.

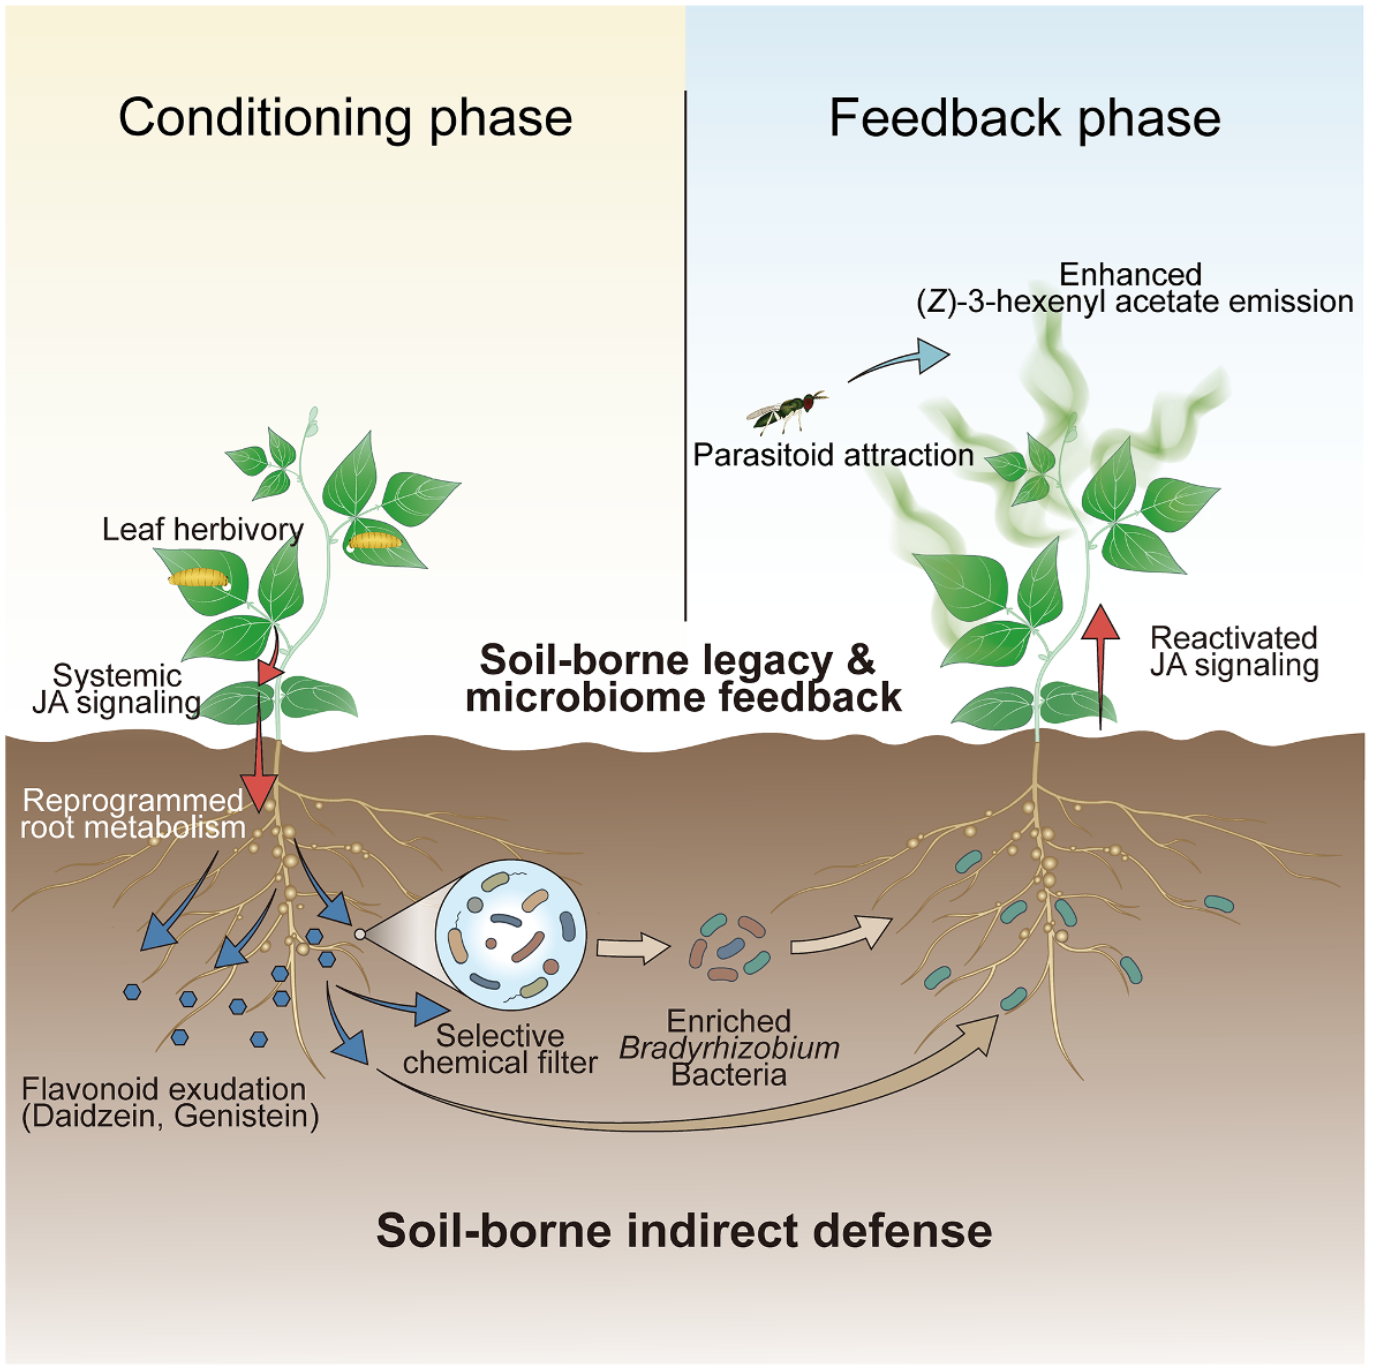
Por otro lado, si la tierra condicionada era esterilizada, las nuevas plantas perdían la capacidad de atracción de parasitoides, lo que indicaba un papel de las comunidades microbianas de la rizosfera (la parte del suelo inmediata a las raíces vivas). En definitiva, la conclusión del estudio fue la siguiente: la planta atacada por la mosca minadora produce ácido jasmónico y emite compuestos volátiles que atraen a parasitoides. Al mismo tiempo, sus raíces segregan flavonoides, lo que modifica la composición de la microbiota local. La comunidad microbiana modificada actúa sobre la nueva generación de plantas induciendo la producción de ácido jasmónico y la emisión de los compuestos volátiles atractivos para los parasitoides[2] (Figura 2).
suelo
Resumen gráfico del artículo comentado en el texto. Las plantas atacadas por la plaga condicionan el suelo liberando flavonoides por sus raíces. Esto modifica la comunidad microbiana local de forma que, al crecer nuevas plantas en ese suelo, estas responden con procesos mediados por la fitohormona ácido jasmónico (JA). Así se estimula la liberación de moléculas volátiles que atraen parasitoides, aunque la planta no haya sido todavía atacada. Fuente: Gao et al. (2026), citado en referencias, con licencia CC-BY 4.0.

Estos resultados son extraordinarios por dos razones: por primera vez se demuestra que las defensas indirectas usadas por las plantas pueden legarse a la siguiente generación a través del suelo. En segundo lugar, la planta involucra para su defensa y la de sus descendientes a organismos de dos reinos diferentes, animales (los parasitoides) y bacterias (las de la rizosfera). Dado que los parasitoides se están utilizando cada vez más en el control biológico de plagas, estos resultados podrían ser de aplicación para la protección de los cultivos.

Notas:

[1] Esta es una razón más para un uso racional de los insecticidas fitosanitarios. Combaten las plagas, pero también pueden afectar a parasitoides beneficiosos y a polinizadores.

[2] Los investigadores pudieron incluso identificar uno de estos compuestos volátiles, el (Z)-3-hexenyl-acetato.

Referencias

Gao, Y., Hong, H., Chen, Q. et al. (2026) Herbivory leaves a soil-borne defensive legacy that recruits parasitoids Cell Reports doi: 10.1016/j.celrep.2026.117869.


Sobre el autor: Ramón Muñoz-Chápuli Oriol es Catedrático de Biología Animal (jubilado) de la Universidad de Málaga.na razón más para un uso racional de los insecticidas fitosanitarios. Combaten las plagas, pero también pueden afectar a parasitoides beneficiosos y a polinizadores.

El artículo Un sistema defensivo es legado por las plantas a su descendencia a través del suelo se ha escrito en Cuaderno de Cultura Científica.
  •  

El olor de la rata topo reina suprime la reproducción de sus rivales


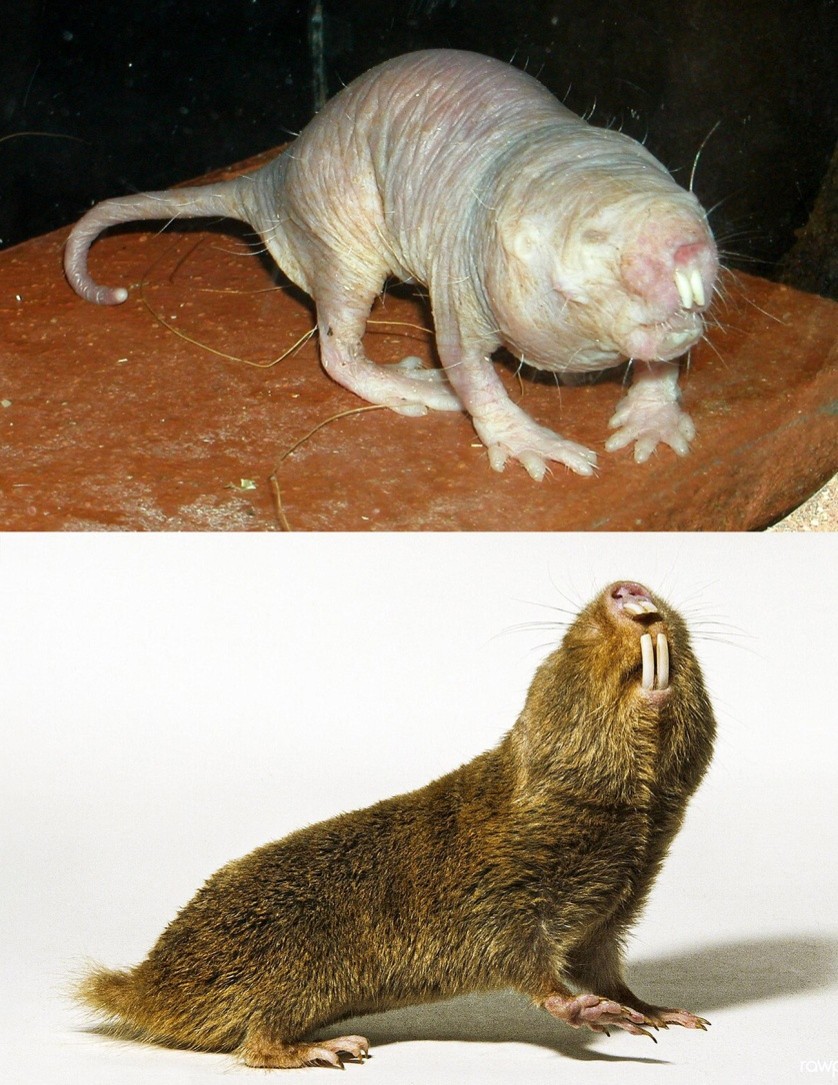
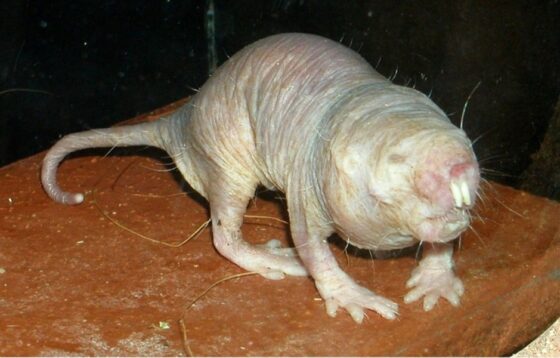
Los himenópteros (hormigas, abejas y avispas) y las termitas constituyen muy frecuentemente colonias eusociales. En ellas, la capacidad reproductora se restringe a una hembra (reina) fecundada por un grupo reducido de machos. Las sucesivas generaciones de descendientes reciben cuidados cooperativos de individuos estériles, hembras en el caso de los himenópteros. Fuera de los insectos, solo encontramos estructuras eusociales en algunas especies de gambas del género Synalpheus y en las ratas topo (familia batiérgidos). Los casos más conocidos son la rata topo desnuda (Heterocephalus glaber) y el fuko o rata topo de Damara (Fukomys damarensis) (Figura 1).

rata topo
Figura 1. Arriba, la rata topo desnuda (Heterocephalus glaber). Fuente: Roman Klementschitz, con licencia CC BY-SA 3.0. Abajo, el fuko o rata topo de Damara (Fukomys damarensis). Fuente: Jessie Cohen, con licencia CC BY 2.0.

Las ratas topo desnudas de África oriental son animales fascinantes. Su longevidad es extraordinaria, ya que pueden superar ampliamente los 30 años de edad, mucho más de lo que correspondería a un mamífero de su tamaño (alrededor de 10 cm, el triple en el caso de las reinas). Sus mecanismos celulares y genéticos las hacen resistentes al cáncer, toleran bajísimos niveles de oxígeno y elevadas concentraciones de CO2, y además son insensibles al dolor causado por sustancias químicas. Viven en madrigueras subterráneas donde forman colonias con una reina o hembra fértil, y de uno a tres machos reproductores. Los demás individuos (entre 20 y 300) son estériles, y se reparten las funciones de excavar túneles, buscar comida, atender a la reina y sus crías, y defender la colonia de agresores.

Cuando la reina muere, las hembras de mayor posición social luchan ferozmente entre ellas hasta que la vencedora se establece como nueva reina, aumenta su tamaño y su peso, y se aparea con los machos. Aquí podemos ver a estos roedores en acción:

El fuko de Damara vive en Angola y Namibia, y también forma colonias subterráneas. Aparte de la reina y uno o dos machos reproductores, el resto de los individuos forma dos grupos: los trabajadores “frecuentes” y los trabajadores “infrecuentes”. Estos últimos realizan menos trabajos, pero en la estación húmeda excavan nuevas galerías y amplían los dominios de la colonia. De esta forma, las hembras pueden encontrarse con machos de otras colonias y, al estar alejadas de su reina, adquieren capacidad reproductiva formando una nueva colonia.

Se sabía que la reina de la rata topo desnuda inhibe activamente la reproducción de las demás hembras, manteniéndolas en una especie de pubertad permanente. Sin embargo, el mecanismo responsable era un misterio hasta ahora. Un grupo internacional de investigación acaba de desvelar en la revista Nature la molécula implicada. Nadie podría haber imaginado su naturaleza.

La investigación consistió en el análisis de 232 compuestos químicos contenidos en el olor corporal de 52 individuos procedentes de ocho colonias, usando una técnica extremadamente sensible: la cromatografía de gases-espectrometría de masas con desorción térmica.

Un compuesto concreto fue detectado exclusivamente en las reinas y, en menor medida, en los neonatos, probablemente por el contacto con sus madres. Se trata del miristato de isopropilo (MIP), un líquido oleoso, incoloro e inodoro para los humanos, muy usado en cosmética y farmacia como vehículo de lociones y cremas, ya que facilita la penetración en la piel de los principios activos. Lo extraño de este descubrimiento es que el MIP no había sido detectado hasta ahora de forma significativa en los seres vivos. Su producción es exclusivamente industrial.

En un siguiente paso se comprobó que el MIP es detectado por las neuronas olfativas de la rata topo, y causa reacción en las áreas olfatorias de su cerebro. En cuanto a sus efectos, si en una colonia se retira a la reina, pero se suministra MIP, las hembras se mantienen en bloqueo reproductivo. Si los animales son tratados con metimazol, un fármaco que causa la pérdida reversible del olfato, las hembras se vuelven insensibles al MIP y luchan entre ellas para acceder el puesto de reina.

rata topo
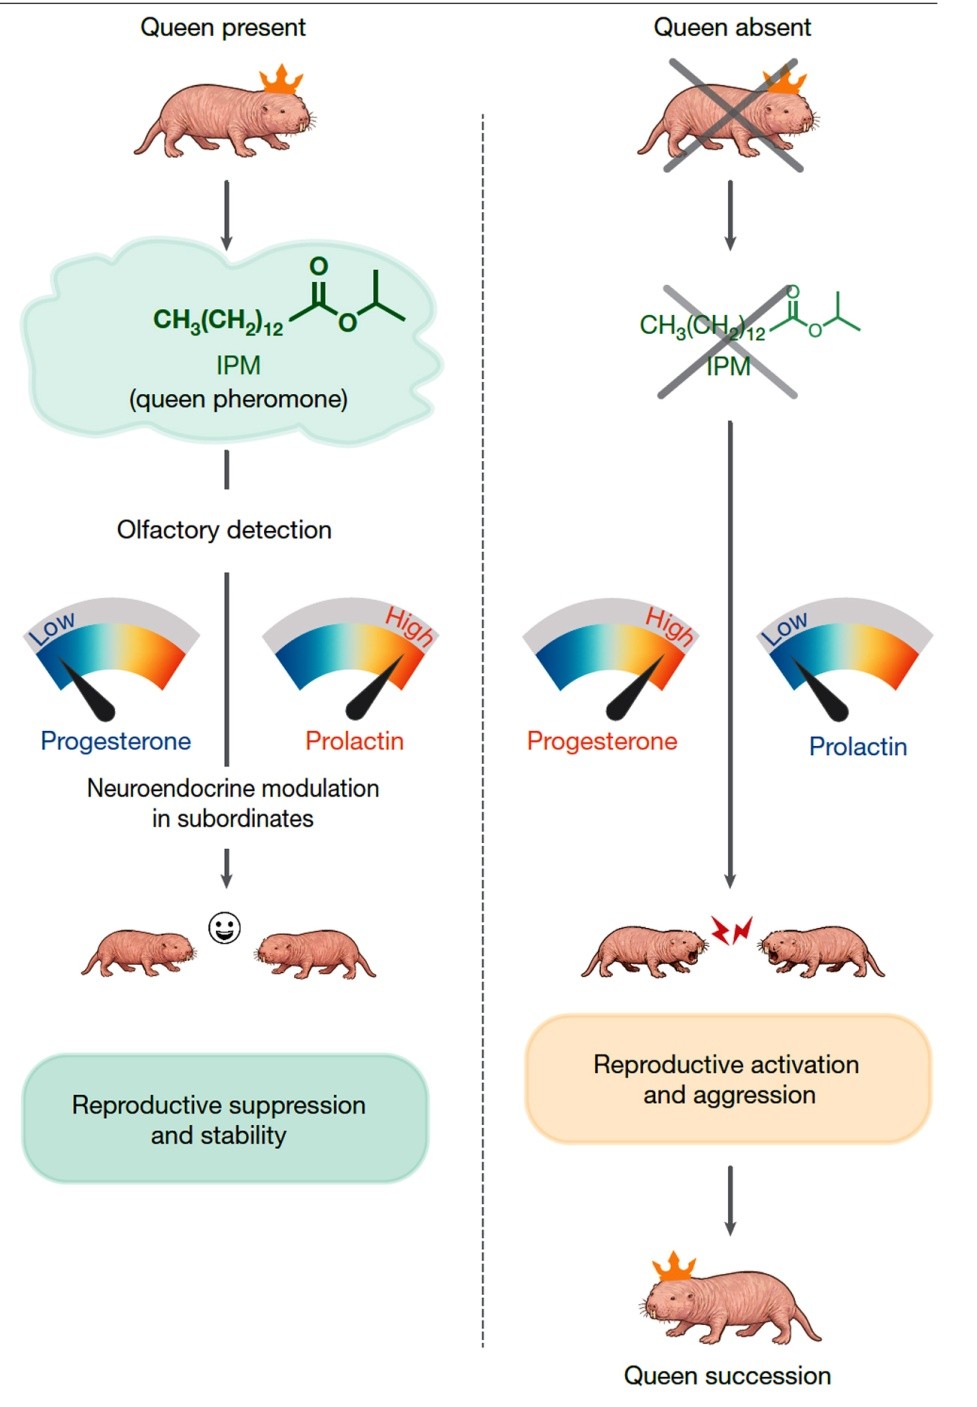
Figura 2. Esquema de la función del miristato de isopropilo (IPM) en la organización eusocial de la rata topo desnuda. A la izquierda, la producción de IPM por la reina mantiene altos los niveles de prolactina y bajos los de progesterona en el resto de las hembras de la colonia. La ausencia de la reina y la desaparición del IPM revierte la situación: baja la prolactina y sube la progesterona en las hembras. Estas se vuelven potencialmente fértiles, pero luchan entre ellas para acceder a la sucesión de la reina. De Khallaf et al. (2026), cita completa en referencias, con licencia CC BY 4.0.

Los investigadores comprobaron que un efecto fisiológico del MIP es el aumento en sangre de la prolactina (Figura 2). Recordemos que esta hormona, que estimula la producción de leche materna, bloquea también la reproducción durante el periodo de lactancia inhibiendo la liberación de la hormona liberadora de gonadotropinas (GnRH). De hecho, cuando una rata topo no reproductora se aísla de la colonia (o se trata con metimazol), sus niveles de prolactina disminuyen y los de progesterona aumentan, con lo que se vuelve fértil (y agresiva para sus rivales).

Lo que resulta fascinante es que la estructura eusocial de las colonias de las ratas topo se haya basado en la utilización del mecanismo natural de inhibición reproductora durante la lactancia, y que esta utilización se haya conseguido mediante un compuesto químico inusual que actúa como un disruptor endocrino. Este nuevo descubrimiento genera muchas preguntas: ¿Cuál es la ruta de biosíntesis del MIP? ¿Cuáles son sus receptores en las neuronas olfativas? ¿Por qué la reina no es sensible a su propio MIP? No será esta la última sorpresa que nos deparen las ratas topo.

Referencias

Khallaf, M.A., Hart, D.W., Luo, W. et al. (2026) A queen odour mediates reproductive suppression in a eusocial mammal Nature doi: 10.1038/s41586-026-10772-5.

Sobre el autor: Ramón Muñoz-Chápuli Oriol es Catedrático de Biología Animal (jubilado) de la Universidad de Málaga.

El artículo El olor de la rata topo reina suprime la reproducción de sus rivales se ha escrito en Cuaderno de Cultura Científica.
  •  

La proactividad de la mosca del vinagre para recuperar su ritmo circadiano

Los ritmos circadianos son oscilaciones periódicas de la fisiología y el comportamiento ajustadas al ciclo día/noche. Los encontramos en bacterias, plantas, hongos y animales. La regulación de estos ritmos ha aparecido de forma independiente en diferentes linajes evolutivos, lo que indica su importancia para el funcionamiento de los seres vivos.

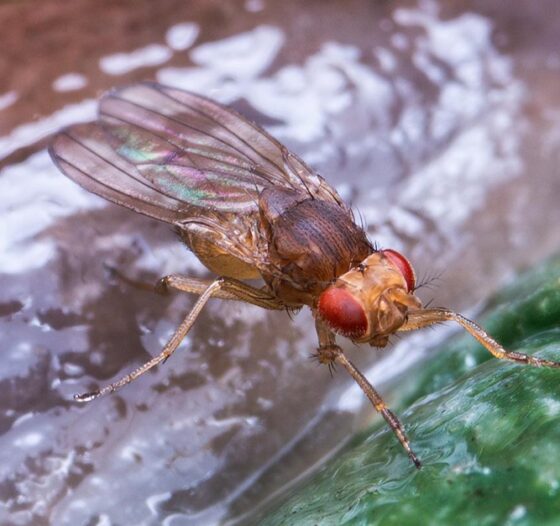
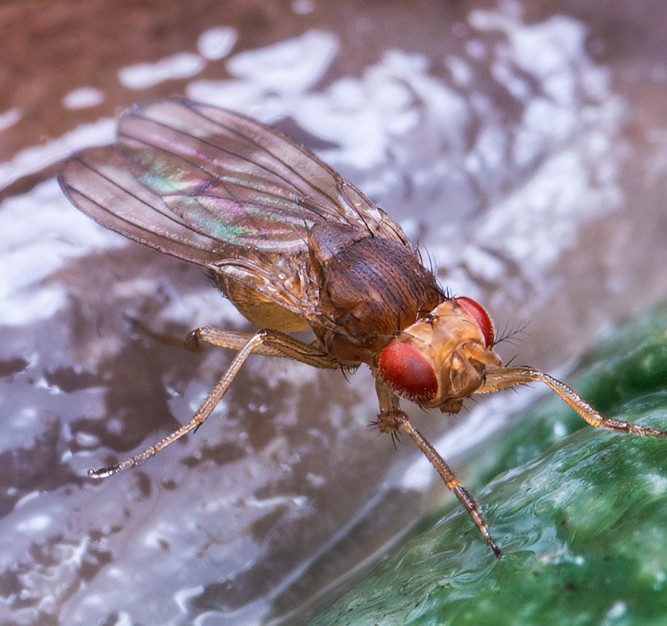
El comportamiento de la mosca del vinagre (Drosophila melanogaster) (Figura 1) muestra un marcado ritmo circadiano, con una actividad locomotora máxima en las transiciones día/noche, es decir, al atardecer y al amanecer. El resto del tiempo, su actividad disminuye y es en esos periodos cuando las moscas dedican algún tiempo a dormir.

Figura 1. La mosca del vinagre Drosophila melanogaster. Foto: Lgcerda, CC BY-SA 4.0.

Las moscas, como la mayoría de los animales, pasan por “estados tipo sueño” caracterizados por periodos reversibles de inactividad ajustados a un ritmo circadiano, disminución de la respuesta a estímulos, un lugar o postura específicos y regulación homeostática (recuperación del tiempo perdido de sueño). El cerebro de Drosophila muestra oscilaciones de actividad poco después del comienzo del sueño y justo antes del despertar, mientras que su fase de sueño profundo se caracteriza por una baja actividad cerebral.

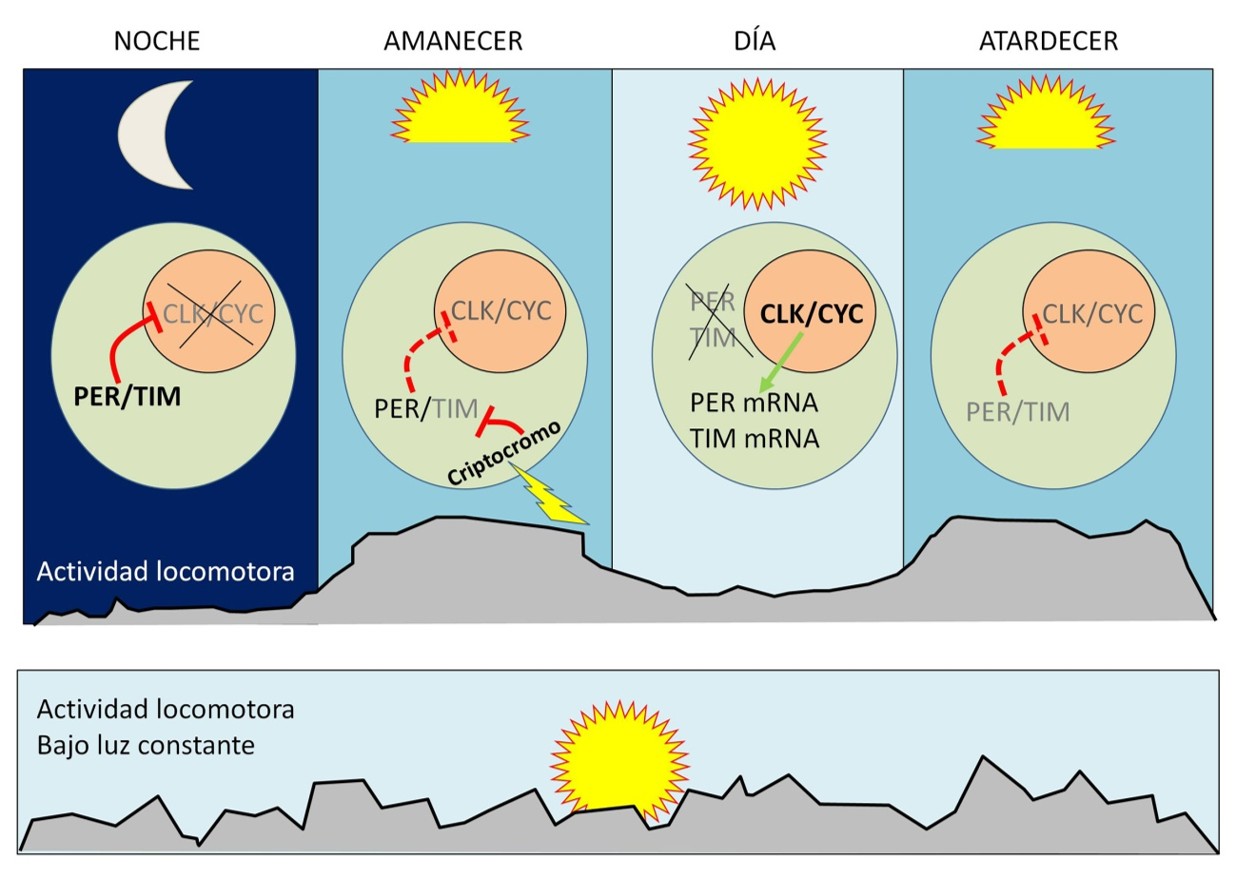
El ritmo circadiano de Drosophila se controla mediante un “reloj molecular” basado en cuatro proteínas. Dos factores (CLK y CYC, por Clock y Cycle) activan la expresión de otras dos proteínas (PER y TIM, por Period y Timeless) que a su vez son represoras de CLK y CYC. Todo esto ocurre en unas 150 neuronas del cerebro de la mosca, compuesto por alrededor de 100 000 neuronas.

Durante la noche, PER y TIM se unen y entran en el núcleo donde actúan inhibiendo a CLK y CYC. Tras el amanecer, la luz diurna detectada por un criptocromo provoca la degradación de TIM. Sin la unión a TIM, PER también resulta degradado, con lo que los niveles de estas dos proteínas son muy bajos durante el día, aunque se siga produciendo y acumulando el ARN mensajero de ambas. Cuando la luz desciende en el crepúsculo, la proteína TIM vuelve a sintetizarse, se une a PER protegiéndola de la degradación, y ambas entran en el núcleo durante la noche para inhibir a CLK y CYC, cerrando el ciclo de 24 h (Figura 2).

Figura 2. El ritmo circadiano es regulado por la interacción de las proteínas Clock (CLK), Cycle (CYC), Period (PER) y Timeless (TIM) en un pequeño grupo de neuronas. Durante la noche, el complejo PER/TIM penetra en el núcleo e inhibe a CLK y CYC. Al amanecer, la luz activa un criptocromo que induce la degradación de TIM. Al quedar aislado, PER también resulta degradado. CLK y CYC se activan progresivamente en el núcleo a lo largo del día, produciendo ARN mensajeros para PER y TIM, aunque las proteínas correspondientes siguen inhibidas. Al disminuir la luz al atardecer, la proteína TIM se va estabilizando, protege a PER de la degradación, y ambas forman el complejo PER/TIM que cierra el ciclo durante la noche. Este reloj molecular induce un comportamiento locomotor mayor en las transiciones día/noche. En condiciones de iluminación continua (abajo), TIM no llega a producirse, y la actividad es irregular a lo largo de todo el día. Ilustración: Ramón Muñoz-Chápuli.

Las moscas mutantes para estos genes pierden su ritmo circadiano, y muestran una actividad irregular a lo largo de todo el día. Esto no es letal para las moscas, pero sí muy perjudicial para su fecundidad y esperanza de vida, que se ven reducidas. Algo similar ocurre si las moscas son expuestas continuamente a la luz (Figura 2). Timeless es degradada de forma permanente, Clock y Cycle no son inhibidas, y las moscas se mantienen activas durante todo el tiempo.

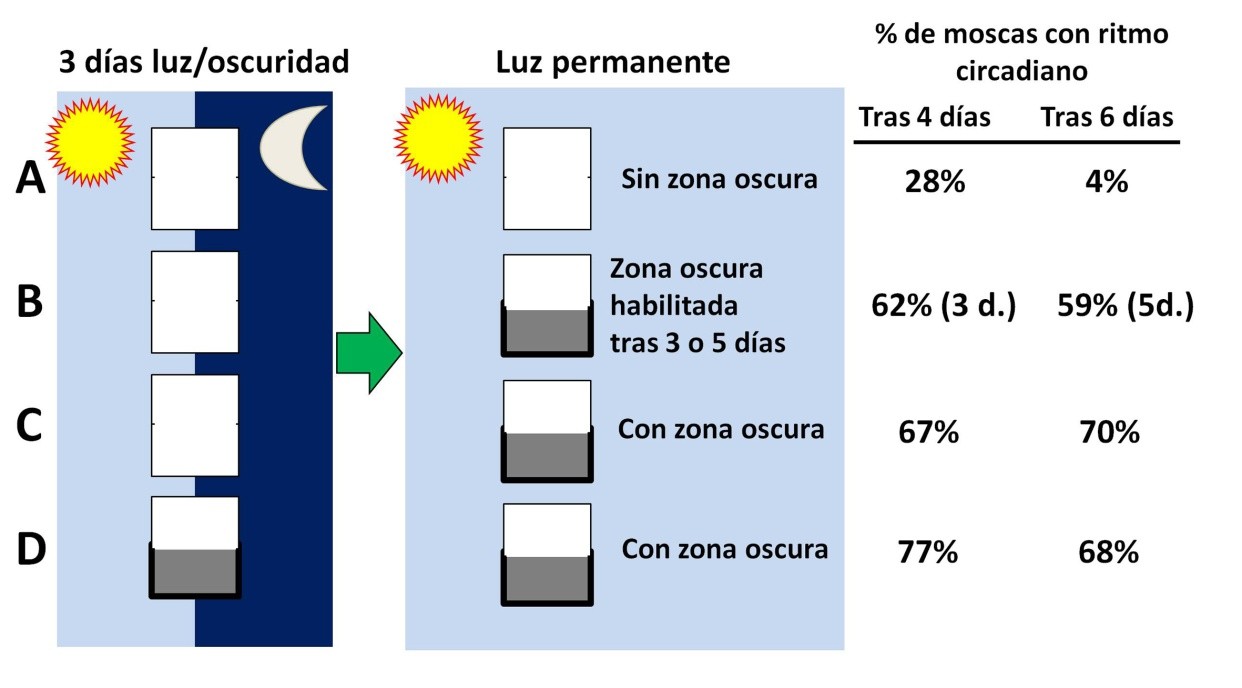
Un grupo de investigación de la universidad de Münster (Alemania) acaba de publicar en Science un sorprendente artículo sobre este tema. Los investigadores dieron a las moscas la oportunidad de moverse libremente por habitáculos parcialmente cubiertos y resguardados de la luz. Otras moscas permanecieron expuestas a la luz continua, y a otro grupo solo se le permitió acceder a los habitáculos parcialmente oscurecidos tras tres o cinco días de exposición continua a la luz, con la consiguiente ruptura del ciclo circadiano (Figura 3).

Figura 3. Resumen del experimento realizado por Coculla et al. (2026). Las moscas fueron colocadas en habitáculos que podían estar parcialmente protegidos de la luz (gris oscuro). Tras su aclimatación, fueron sometidas a iluminación permanente. Las que no podían optar por zonas oscuras del habitáculo perdieron su ritmo circadiano (A). Alrededor del 70% de las que sí podían elegir entre luz y oscuridad mantuvo dicho ritmo (C y D). Sorprendentemente, un 60% de las que habían perdido el ritmo circadiano a causa de la iluminación continua lo recuperó cuando pudieron optar por zonas resguardadas de la luz tras 3 o 5 días (B). Ilustración: Ramón Muñoz-Chápuli, basada en resultados de Coculla et al. (2026).

Como era de esperar, la mayoría de las moscas expuestas continuamente a la luz perdió su ritmo circadiano, mostrando patrones irregulares de actividad. Sin embargo, alrededor del 70% de las moscas que podían elegir libremente entre luz y oscuridad mantuvo su ritmo circadiano de actividad, repartiendo su tiempo entre ambas zonas. Y lo más sorprendente fue que alrededor de un 60% de las moscas expuestas a la luz durante tres o cinco días, y que habían perdido su ritmo circadiano, lo recuperó rápidamente tras darles la oportunidad de elegir entre ambientes iluminados y oscuros. Este ritmo recuperado o mantenido fue algo más largo que el típico ciclo diario, alcanzando entre 26 y 28 horas.

Esto quiere decir que las moscas ajustaban su comportamiento y sus preferencias ambientales para mantener o recuperar el ritmo circadiano perdido. Lo más singular es que una vez perdido ese ritmo, y por tanto con el reloj circadiano desajustado, las moscas “supieran” en qué medida debían alternar áreas iluminadas y oscuras para restablecer su reloj.

Por otro lado, la calidad del sueño de las moscas, valorada por el número de episodios de sueño y su duración, se deteriora en las moscas que han perdido el ritmo circadiano, pero tiene a recuperarse también, de forma lenta y progresiva, una vez restablecido dicho ritmo.

El experimento no solo insiste en la importancia de los ritmos circadianos para la fisiología animal, sino que asocia el mantenimiento de los ritmos con pautas activas de comportamiento que resultaban impensables hasta ahora.

Referencias

Coculla, A., García Rodríguez, L., Ogueta, M. et al. (2026). Fruit flies actively restart their circadian clock by proactively shaping their environment. Science doi: 10.1126/science.adw2239.

Sobre el autor: Ramón Muñoz-Chápuli Oriol es Catedrático de Biología Animal (jubilado) de la Universidad de Málaga.

El artículo La proactividad de la mosca del vinagre para recuperar su ritmo circadiano se ha escrito en Cuaderno de Cultura Científica.
  •  

Un origen ancestral para el organizador de Spemann-Mangold

«No es el nacimiento, el matrimonio o la muerte, sino la gastrulación, el momento más importante de tu vida» (Lewis Wolpert)

La frase de este gran biólogo británico parece una humorada, pero tiene mucho sentido. Durante nuestra gastrulación actuó un organizador que dirigió nuestro desarrollo y nos hizo ser como somos.

Tenemos que explicar esto más despacio. La gastrulación es esa parte del desarrollo embrionario en la cual unas células superficiales se introducen en el embrión para formar la futura cavidad digestiva. Estas células se denominan endodermo. Las células que permanecen en la superficie (ectodermo) originarán la epidermis y el sistema nervioso. Podemos ver la gastrulación de un anfibio en la primera parte de este vídeo:

Todos los animales, excepto las esponjas y los placozoos [1], gastrulan. En la gastrulación de los demás animales (excepto los cnidarios y los bellísimos ctenóforos) un grupo de células (el mesodermo) se intercala entre ecto y endodermo. De estas células mesodérmicas derivan múltiples sistemas: muscular, circulatorio, excretor, etc.

La pregunta es ¿cómo las células “saben” hacia dónde dirigirse y lo que tienen que hacer? Y ahí es donde entra en escena el organizador.

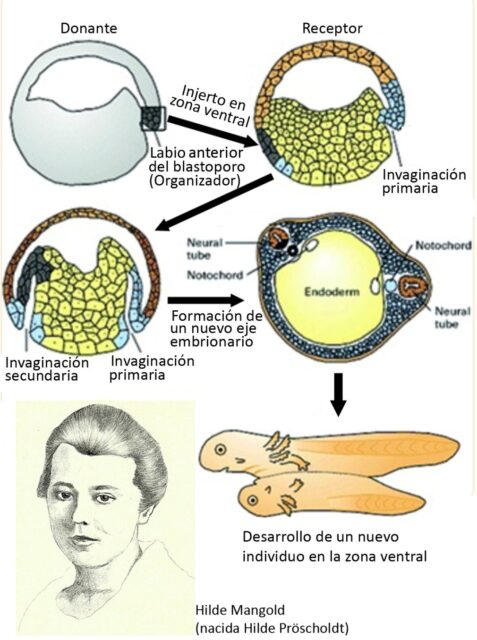
En los años 20 del siglo pasado, Hilde Mangold, una estudiante de doctorado del laboratorio de Hans Spemann (Instituto Zoológico de Friburgo), investigaba el desarrollo de los anfibios. Uno de sus experimentos consistió en trasplantar un fragmento del labio anterior del blastoporo (el orificio creado por la entrada del endodermo durante la gastrulación) a otras zonas de la gástrula. Sorprendentemente, en el lugar del injerto se generaba un segundo embrión (Figura 1). Mangold comprobó que las células injertadas no formaban el embrión, sino que inducían a los tejidos próximos, cambiando su destino, para constituir un nuevo individuo. Esta región del labio anterior del blastoporo con tan extraordinarias propiedades recibió el nombre de “organizador de Spemann-Mangold”[2].

Figura 1. Figura 1. Experimento crucial de Hilde Mangold. El injerto del labio anterior del blastoporo en la región ventral de otra gástrula cambia el destino de los tejidos circundantes y origina un nuevo individuo. Modificado de Van Robays, J., Hilde Mangold-Pröscholdt (1898 – 1924): The Spemann-Mangold Organizer, con licencia CC-BY 4.0. El retrato de Mangold es de Patricia Díaz Belamendia, CC0.

El organizador fue uno de los descubrimientos más trascendentales para la biología del siglo XX, ya que revelaba la existencia de unos insospechados mecanismos moleculares de inducción (morfógenos). Los morfógenos fueron identificados en las siguientes décadas, y permitieron comprender cómo se construye un organismo durante el desarrollo. Por desgracia, el destino de Hilde Mangold fue trágico, ya que falleció en un accidente doméstico a la edad de 25 años. Su supervisor, Hans Spemann, recibió el Nobel de Medicina y Fisiología en 1935, en lo que constituye el único Premio Nobel de Medicina otorgado a un trabajo de doctorado.

Hoy día conocemos bien cómo actúa el organizador en la gastrulación de los vertebrados, controlando la organización espacial del embrión y el destino de sus diferentes tejidos. En cambio, el desarrollo de la mosca del vinagre (Drosophila) no implica un organizador como el de los vertebrados, ya que intervienen sobre todo morfógenos de origen materno. Por esto, se llegó a pensar que el organizador de Spemann-Mangold era una innovación evolutiva de los vertebrados.

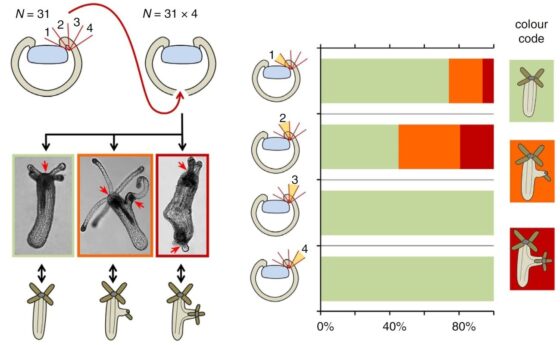
Hace diez años, un grupo de investigadores de la Universidad de Viena demostró la existencia del organizador en un cnidario, la anémona Nematostella vectensis. El trasplante del margen del blastoporo inducía un segundo eje corporal, una nueva boca y una nueva cavidad digestiva (Figura 2). Lo más relevante era que los morfógenos identificados en este proceso de inducción correspondían con los del organizador de Spemann-Mangold. Esto fue una auténtica sorpresa, ya que el linaje de los cnidarios se separó del resto de animales (los bilaterales) hace alrededor de 600 millones de años, en los albores de la evolución animal.

Figura 2. Demostración de la existencia de un organizador en el cnidario Nematostella. Se injertan células procedentes de las zonas marcadas 1-4, próximas al margen del blastoporo. Solo las procedentes de la zona 1 y, sobre todo, de la 2, inducen un nuevo eje corporal. De Kraus et al. (2016), https://www.nature.com/articles/ncomms11694, con licencia CC-BY 4.0.

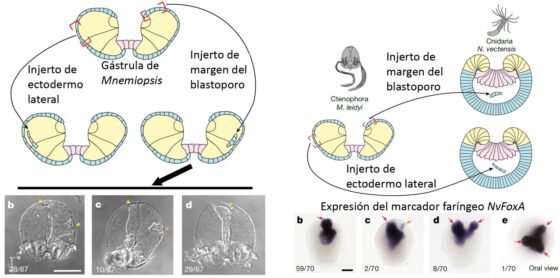
Un estudio que acaba de publicarse en Nature por el grupo de Andreas Hejnol (Universidad de Jena) ha confirmado el origen antiguo del organizador. El modelo estudiado fue un ctenóforo (Mnemiopsis leidy), lo cual tiene un interés especial, como veremos luego. De nuevo, el trasplante del margen blastoporal indujo la formación de un nuevo eje corporal. Además, cuando el organizador se trasplantó, no a otro ctenóforo, sino a la anémona Nematostella, se generó un segundo eje en un 16% de los casos (Figura 3). Esto demostraba el carácter “universal” del mecanismo organizador, capaz de funcionar en animales muy alejados evolutivamente.

Figura 3. Izquierda: El margen del blastoporo del ctenóforo Mnemiopsis leidy también tiene función organizadora. De 67 injertos, 28 generaron una segunda boca y faringe (b) y 10 una nueva boca (c). El injerto de ectodermo lateral no tuvo ningún efecto. Derecha: El injerto del organizador de Mnemiopsis en gástrulas del cnidario Nematostella indujo un segundo sitio de expresión de NvFoxA, un marcador de la faringe, en 11 de 70 casos. Modificado de Kremnyov et al. (2026), cita completa en referencias, con licencia CC-BY 4.0.

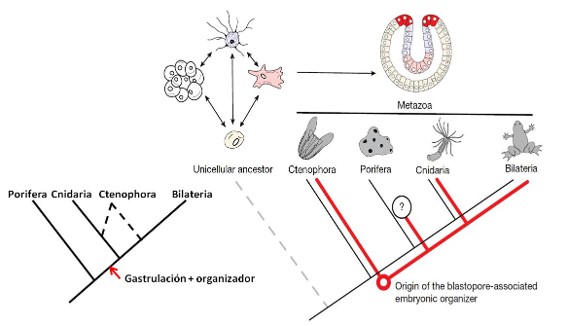
Hay una derivada especialmente interesante de este experimento. Existe un debate no resuelto en la actualidad acerca de la posición de los ctenóforos en la evolución animal. Tradicionalmente se les venía relacionando con los cnidarios, con los que comparten una organización corporal similar. Sin embargo, a partir de 2008, diversos estudios han propuesto que los ctenóforos constituyen el linaje más basal de todos los animales (Figura 4). Desde entonces se han sucedido argumentos a favor y en contra de esta postura. Lo que nos interesa ahora es la idea, lanzada por el grupo de Hejnol, de que el organizador estaría en la mismísima base de la organización animal, y que fue decisivo para dar orden espacial a un conglomerado ancestral de células. Se trata de una hipótesis bastante discutible, pero que estimulará sin duda el debate sobre el origen y la evolución temprana de los animales.

Figura 4. Izquierda: Hipótesis tradicional sobre la filogenia basal de los animales. Las esponjas (Porifera) serían el linaje más basal, mientras que los ctenóforos estarían relacionados con cnidarios o bilaterales. El origen del organizador se asocia al proceso de gastrulación, que no existe en las esponjas. Derecha: Si asumimos el carácter basal de los ctenóforos, de acuerdo con recientes estudios, gastrulación y organizador serían procesos concomitantes con el propio origen de los animales. Se supone que en las esponjas estos procesos se habrían perdido. De Kremnyov et al. (2026), cita completa en referencias, con licencia CC-BY 4.0.

Referencias

Kremnyov, S., Lebedeva, T., Genikhovich, G. et al. (2026) A blastoporal organizer in a ctenophore Nature doi: 10.1038/s41586-026-10643-z.


Sobre el autor: Ramón Muñoz-Chápuli Oriol es Catedrático de Biología Animal (jubilado) de la Universidad de Málaga.

Notas:

[1] Los placozoos son unos minúsculos animales marinos en forma de disco que carecen de órganos.

[2] En muchos libros aparece como “organizador de Spemann”, lo que constituye una flagrante injusticia.

El artículo Un origen ancestral para el organizador de Spemann-Mangold se ha escrito en Cuaderno de Cultura Científica.
  •  
❌